содержание .. 1 2 3 4 5 6 7 ..
РАЗДЕЛЕНИЕ БЕЛКОВ ПО РАЗМЕРУ С ИСПОЛЬЗОВАНИЕМ ДДС-Na (ЭЛЕКТРОФОРЕЗ)
Существо метода
Рассмотренный выше электрофорез
белков в простой систе-
ме удобно использовать для их разделения, но не для характери-
стики. Электрофоретическая подвижность каждого белка в про-
стой системе зависит одновременно и от его суммарного заряда,
и от молекулярной массы, и от конфигурации, и, наконец, от
жесткости упаковки полипептидной цепи. Вклад каждого из этих
факторов неизвестен и может существенно изменяться в зави-
симости от условий электрофореза. Для установления строгой
количественной корреляции между каким-либо одним из пере-
численных параметров и электрофоретической подвижностью
белка надо исключить влияние всех остальных.
Электрофорез в ПААГ с использованием ДДС-Na позволяет
фракционировать белки в зависимости от значений только од-
ного параметра — их молекулярной массы. Для этого белки в
исходном растворе препарата обрабатывают не менее чем трех-
кратным избытком ДДС-Na. За счет гидрофобных взаимодей-
ствий детергент примерно одинаково связывается с подавляю-
щим большинством белков в соотношении 1,4 мг ДДС-Na на
56
1 мг белка [Reynolds, Tanford, 1970]. Огромный избыток пол-
ностью диссоциированных остатков сульфокислоты, привноси-
мых с детергентом, в большинстве случаев делает несуществен-
ной роль собственного заряда белка. Постоянство соотношения
детергент/белок делает практически одинаковым отношение от-
рицательного заряда к массе для любого белка, даже для гисто-
нов с их заметным собственным положительным зарядом. Бла-
годаря
электрическому отталкиванию
тесно расположенных по поверхности
белка остатков серной кислоты поли-
пептидная цепочка распрямляется и
приобретает форму жесткого эллипсои-
да вращения. Его малая ось имеет дли-
ну 1,6 нм, а размер большой линейно
связан с числом аминокислотных остат-
ков, а следовательно, с молекулярной
массой белка. Это справедливо лишь
для неразветвленных полипептидов, ли-
шенных дисульфидных мостиков, поэ-
тому одновременно с обработкой ДДС-
Na необходимо обеспечить полную де-
натурацию белка и разрыв всех S—S-
связей. С этой целью белковый препа-
рат обрабатывают высокой концентра-
цией b-меркаптоэтанола при повышен-
ной температуре.
|
|
|
Рис.
18. Линейная зависи- |
Электрофоретическая подвижность
(и') жесткого комплекса белок — ДДС-Na оказывается связан-
ной с молекулярной массой белка (М) простым соотношением:
и'=А — В lg М,
где А и В — коэффициенты, зависящие от порис-
тости геля, температуры и других условий эксперимента. Вели-
чину и' удобнее представлять в относительных единицах, выра-
жающих отношение путей миграции белка и бромфенолового
синего за время электрофореза, т. е. в значениях введенной ра-
нее величины Rf. Такая замена
отразится только на значениях
коэффициентов А и В. Нет смысла определять эти коэффициенты
в каждом опыте. Одновременно с фракционированием исследуе-
мой смеси можно провести электрофорез набора белков-«марке-
ров», молекулярные массы которых точно известны. Разумеется,
вся предварительная обработка ДДС-Na и меркаптоэтанолом
должна быть строго одинаковой для исследуемого препарата и
маркеров. При электрофорезе в пластине для смеси маркеров
можно отвести отдельный трек. При использовании трубок мар-
керы лучше добавить прямо в препарат, так как нельзя гаран-
тировать строгой идентичности условий электрофореза в двух
разных трубках.
По окончании электрофореза, измерив пути миграции бром-
фенолового синего и каждого из маркеров, можно рассчитать
значения Rf и, зная молекулярные
массы маркеров, построить
57
экспериментальную зависимость lg M от Rf для данного опыта.
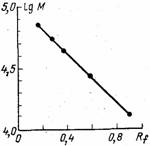
Если пористость геля выбрана удачно (см. ниже), такая зави-
симость получается линейной (рис. 18). Определив теперь rf
для интересующего нас белка, из графика можно найти для него
величину lg M и подсчитать M.
Положение и наклон прямой
на графике изменяются при вариации концентрации ПААГ и
других условий эксперимента, поэтому нельзя пользоваться ка-
кой-либо стандартной калибровкой. График зависимости Ig M
от Rf надо строить для каждого
опыта. Отметим также, что при
определении Rf надо вводить поправки на набухание или съежи-
вание геля при фиксации, окраске белков и удалении красителя,
приводя все к исходному линейному размеру.
Метод определения молекулярной массы белков
электрофоре-
зом в ПААГ с ДДС-Na завоевал себе прочную репутацию и ис-
пользуется очень широко. Тем не менее следует проявлять из-
вестную осторожность. Исследуемый белок может оказаться
принадлежащим к той, по-видимому, сравнительно немногочис-
ленной, категории белков, для которой количественное соотно-
шение в комплексе с ДДС-Na существенно отличается от 1 : 1,4.
Есть данные о том, что на полноту
комплексообразования с
ДДС-Na может влиять распределение зарядов по полипептид-
ной цепочке. Показано, например, что обработка рибонуклеазы
малеиновой кислотой снижает количество связывающегося с ней
ДДС-Na с 1,9 до 0,3 г на 1 г белка. Такая обработка не изме-
няет заметным образом молекулярной массы рибонуклеазы, но
вносит отрицательный заряд карбоксила на место положитель-
ного заряда аминогруппы. С другой стороны, на связывании
ДДС-Na с лизоцимом обработка малеиновой кислотой никак не
сказывается [Tung, Knight,
1972]. Ненормальное связывание
ДДС-Na может быть также обусловлено необычной обогащен-
ностью белка какой-либо гидрофильной аминокислотой. Глико-
протеиды хуже связываются с ДДС-Na, чем чистые белки.
Разной степенью связывания
ДДС-Na, по-видимому, следует
объяснить и успешное разделение a-
и b-цепей глобина кролика
электрофорезом в 12,5%-ном ПААГ с ДДС-Na. Различие моле-
кулярных масс этих цепей (15 419 и 16 000) вряд ли само по
себе могло бы обеспечить это разделение (Wood, Shaeffer, 1975].
Недавно было показано, что единственная мутационная замена
аминокислоты (Арг®Цис) в белке с
молекулярной массой 26 000
приводит к кажущемуся изменению этой величины на 1000. Су-
щественно отметить, что такое изменение связано с заменой
только одного из нескольких остатков аргинина, входящих в со-
став белка. Следовательно, в этом случае играет роль еще и
окружение аргинина [Noel et al.,
1979].
Рассмотренные примеры не могут дискредитировать
плодо-
творный метод определения молекулярной массы белков элект-
рофорезом с участием ДДС-Na. Они лишь указывают на необхо-
димость некоторой осторожности и критичности в оценке ре-
зультатов эксперимента, особенно с малоизученными белками.
58
Выбор пористости геля
При данной пористости
(концентрации) геля описанная выше
линейная зависимость имеет место только для белков, молеку-
лярные массы которых лежат в определенном интервале. Слиш-
ком крупные для данного геля белки, очевидно, вовсе не смогут
мигрировать в нем. Подвижности слишком малых белков, для
которых поры геля практически не создают препятствий, будут
зависеть не от их молекулярной массы, а только от отношения
заряда к массе. Как указывалось, в присутствии ДДС-Na это
отношение одинаково для большинства белков. Для ориентиров-
ки можно назвать некоторые цифры. Так, для одинаково сши-
тых гелей (С = 3,3) были рекомендованы следующие значения Т
в зависимости от молекулярной массы белков (M)
[Dunker,
Rueckert, 1969]:
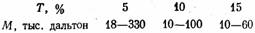
Фирма BDH
для своего стандартного набора белков-марке-
ров в интервале М 56 — 280 тыс. дальтон предлагает использо-
вать гели с T = 3,3, а в интервале 14 — 72 тыс.
— с T = 10; в обоих
случаях С = 2,6. Отметим попутно, что эффект торможения миг-
рации биополимеров в слабосшитых гелях с С < 2,6 быстро
ос-
лабляется с уменьшением С при неизменном значении Т. По-
видимому, в этом случае ярко проявляется способность жестко-
го комплекса белок — ДДС-Na раздвигать гибкие, слабосшитые
нити акриламида.
Для определения молекулярных масс пептидов та же фирма
выпускает набор стандартных фрагментов миоглобина с диапа-
зоном М 2,5 — 17 тыс. Для него и соответствующих пептидов
ре-
комендуется использовать сильно сшитый гель (Т = 12,5; С =
= 9), содержащий 8 М мочевину, которая усиливает торможение
малых пептидов в геле.
О важности правильного выбора пористости геля можно су-
дить из сопоставления двух картин разделения набора из семи
маркерных белков (рис. 19) [Fehrnström, Moberg, 1977]:
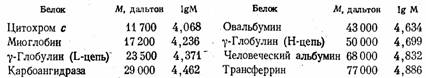
Разделение вели в
приборе «Мультифор», использовав 5%- и
10%-ный ПААГ. Легко видеть, что в 5%-ном геле миоглобин
движется почти с такой же скоростью, как и цитохром с. При
перенесении результатов этих опытов на графики (рис. 20) по-
лучается, как и следовало ожидать, что точка, отвечающая по-
59
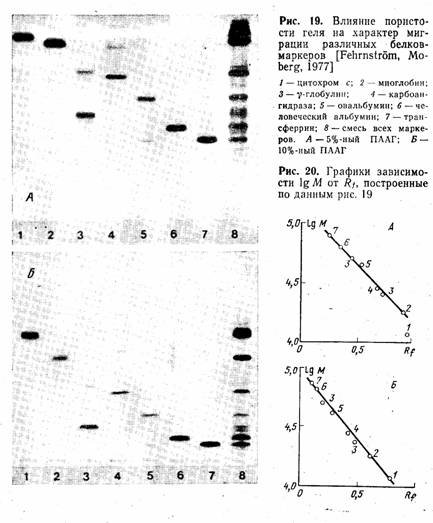
ложению цитохрома с в 5%-ном геле, выпадает из прямой ли-
нии, проходящей через все остальные точки, тогда как для 10%-
ного геля она оказывается на такой прямой.
Присутствие мочевины и неионных детергентов
Хотя для коротких олигопептидов
присутствие мочевины ока-
зывается полезным, при электрофорезе белков ее не следует
вводить в гель. Мочевина вносит конформационные изменения в
структуру белка. Влияние этих изменений как на степень связы-
вания ДДС-Na, так и на характер миграции комплекса белок —
ДДС-Na в геле еще не изучено.
60
Из аналогичных соображений
следует удалять из белкового
препарата перед его обработкой ДДС-Na другие детергенты, в
частности неионные. Иногда это удается добиться за счет вне-
сения в препарат еще большего избытка ДДС-Na, с тем чтобы
он вытеснял неионный детергент из связи с белком, образуя с
ним свободно растворенные смешанные мицеллы. Такие мицел-
лы могут «уходить» от комплекса белок — ДДС-Na, быстро миг-
рируя в электрическом поле [Nielsen, Reynolds,
1978]. Широко
используемый для растворения мембранных белков Тритон
Х-100 сильно мешает проведению электрофореза в ПААГ с
ДДС-Na. Его можно извлечь из белкового препарата экстрак-
цией хлороформом. Чтобы предотвратить выпадение плохо рас-
творимых белков в осадок, перед экстракцией к препарату сле-
дует добавить ДДС-Na до 1%, который в хлороформ не перехо-
дит [Horikawa, Ogawara, 1979].
Выбор рабочего буфера геля
Из изложенного ясно, что рН буфера
в этом варианте элект-
рофореза не играет существенной роли, так как заряд белка оп-
ределяется его комплексированием с ДДС-Na. Обычно работают
с нейтральными буферами. По традиции, идущей еще от пионер-
ской работы Вебера и Осборн [Weber, Osborn,
1969], часто ис-
пользуют 0,1 М Na-фосфатный буфер, рН 7,1. Его концентрация
обусловлена только желанием обеспечить 10-кратное различие в
электропроводностях буферов геля и препарата. В качестве по-
следнего берут 0,01 М Na-фосфат, рН. 7,1. Как уже указывалось,
такое различие обеспечивает концентрирование исходной поло-
сы при переходе белков из буфера препарата в гель. Однако
ввиду большой электропроводности Na-фосфатного буфера на-
пряженность поля приходится ограничивать значением 5 В/см,
что замедляет процесс разделения, поэтому вместе Na-фосфат-
ного имеет смысл использовать другой, менее проводящий бу-
фер, например имидазолфосфатный, рН 7. Молярность рабочего
буфера можно снизить до 0,05 М, сохранив для буфера препара-
та концентрацию 0,01 М. Это позволит значительно увеличить
напряженность поля и сократить продолжительность электрофо-
реза.
В электродных резервуарах обычно используют тот же буфер,
что и в геле. В буферы вносят и ДДС-Na до концентрации 0,1%.
Необходимость присутствия ДДС-Na в рабочем буфере геля
одно время оспаривалась [Stoklosa, Latz,
1974]. Авторы цити-
руемой работы утверждали, что ДДС-Na образует с белком
прочный комплекс, не разрушающийся в процессе электрофоре-
за. В более поздней работе, напротив, подчеркивается необходи-
мость введения ДДС-Na в буфер геля или хотя бы в катодный
буфер, откуда он будет поступать в гель. Показано, что ДДС-Na
может выходить из комплекса с белком. В тех случаях, когда
скорость миграции детергента в геле намного больше, чем бел-
61
ка, последний будет терять ДДС-Na и
изменять свою подвиж-
ность в геле [Kubo et al.,
1979]. Это обстоятельство было пред-
ложено использовать в своеобразном процессе двухстадийного
электрофореза [Sorimachi, Condliffe,
1977]. После обычной об-
работки ДДС-Na и b-меркаптоэтанолом
авторы сначала вели
электрофорез в течение 2 ч в 10%-ном ПААГ, полимеризован-
ном, как обычно, в 0,1 М Na-фосфатном буфере (рН 7) с 0,1%
ДДС-Na. Через некоторое время буфер в катодном резервуаре
заменяли на такой же, но без ДДС-Na. Это приводило к быст-
рой очистке геля от детергента, мигрирующего к аноду. Затем
от ДДС-Na освобождались и белки. Дальнейшее разделение шло
уже по заряду белков. При этом рН буфера можно с самого на-
чала выбрать оптимальным именно для второго этапа разделе-
ния, поскольку на первом этапе в присутствии ДДС-Na рН роли
не играет.
Подготовка белкового препарата
На эту операцию следует обратить
особое внимание. Сопо-
ставлять молекулярные массы белков по скорости их миграции
можно только в том случае, когда есть уверенность в полной де-
натурации белка при обработке его ДДС-Na.
Вебер и сотрудники ввели широко употребимую до сих пор
процедуру обработки. Белковый препарат диализуют против
0,01 М Na-фосфата, содержащего 0,1% ДДС-Na и 0,1% b-мер-
каптоэтанола, удаляя из него остатки соли. Затем концентрации
ДДС-Na и b-меркаптоэтанола увеличивают
до 1% (каждого) и
прогревают препарат при 100° в течение 2 мин. Концентрация
белка при этом должна составлять около 1 мг/мл [Weber et al.,
1972]. Если предполагается присутствие в препарате протеаз,
прогрев можно продлить до 5 мин. Показано, например, что
трипсин и химотрипсин сохраняют значительную каталитиче-
скую активность в .присутствии 1% ДДС-Na, но прогрев при
100° в течение 5 мин эту активность полностью подавляет [Рог-
tci, Preston, 1975]. Если же
при высокой температуре наблюда-
ется неферментативный гидролиз белка, то прогревание при 100°
можно заменить инкубацией при 37° в течение 2 ч. Перед нане-
сением препарата на гель в него дополнительно добавляют b-
меркаптоэтанол до концентрации 4 — 5%.
Несмотря на жесткость описанной обработки, авторы метода
рекомендуют при определении молекулярной массы малоизу-
ченного белка проверить полноту его денатурации. Для этой це-
ли они предлагают обрабатывать контрольный препарат белка
по более сложной прописи, гарантирующей его полную денату-
рацию (7 М гуанидинхлорид и 1,5%-ный b-меркаптоэтанол
с по-
следующим алкилированием йодацетамидом). После этого фор-
мируют комплекс белка с ДДС-Na и сопоставляют картины
электрофореза белка, обработанного обычным способом, и кон-
трольного препарата.
62
С другой стороны, некоторые
белки, в частности липопротеи-
ды, при кипячении с 1 % ДДС-Na и 1 % b-меркаптоэтанола
мо-
гут выпасть в осадок и не войти в гель. В этих случаях прихо-
дится уменьшать концентрацию b-меркаптоэтанола
или не вво-
дить его совсем.
При повышенной температуре иногда
обнаруживается уси-
ленный протеолиз исходных белков. Известно, что денатурация
белка многократно увеличивает его доступность для атаки про-
теолитическими ферментами. ДДС-Na не входит в число их эф-
фективных ингибиторов. Если опасность протеолиза существу-
ет, в исходный препарат до денатурации белков вводят мощные
ингибиторы протеаз: фенилметилсульфонилфторид
(300 мкг/мл) и 1,10-фенантролин (1 мг/мл).
Проведение электрофореза
Что касается режима электрофореза,
т. е. выбора рабочего
напряжения, силы тока и продолжительности разделения, то
здесь остаются в силе все те соображения, которые были приве-
дены в предыдущем разделе. Вкладом ДДС-Na в электропро-
водность рабочего буфера можно при этом пренебречь. Электро-
форез не следует вести на холоду, так как это может повлечь за
собой выпадение ДДС-Na в осадок (его растворимость очень
сильно зависит от температуры). При длительном электрофоре-
зе электродные буферы следует обновлять.
Для белков с молекулярной массой менее 12000 определение
ее электрофорезом в ПААГ с ДДС-Na становится ненадежным
даже при высокой концентрации геля. В этом случае локальные
различия в составе и заряде белков, влияющие на их взаимо-
действие с ДДС-Na, уже не усредняются. Степень надежности
определения молекулярной массы малых белков и олигопепти-
дов увеличивается, как было указано, при введении в буфер 8 М
мочевины, а также при увеличении степени сшивки геля.
В 12,5%-ном ПААГ с 0,1% ДДС-Na в присутствии 8 М мочеви-
ны при электрофорезе малых (данзилированных) олигопептидов
с диапазоном М от 1 до 12 тыс. дальтон наблюдалась хорошая
линейная зависимость lg M
от Rf [Kato et al., 1975], однако точки
для инсулина (М=5782) и глюкагона (M = 3483) из
графика
этой зависимости выпадали.
Разделение улучшается в случае малых исходных количеств
белка (1 — 5 мкг) и длинных гелей с расстоянием миграции око-
ло 15 см. При определении молекулярной массы неизвестного
белка лучше начать подбор условий с 7,5%-ного ПААГ и соот-
ветствующего набора стандартных маркеров. Затем следует
поварьировать условия — и, в частности, сопоставить значения
молекулярной массы исследуемого белка, получающиеся в ге-
лях с различным содержанием акриламида.
В цитированной выше работе Вебера и др. приведен список
около 40 стабильных белков, которые можно использовать в ка-
63
честве стандартных маркеров в
интервале М 12 — 200 тыс. даль-
тон. Однако молекулярные массы продажных белков, особенно
при М > 70 тыс., далеко не всегда надежно известны,
поэтому
фирма BDH при разработке своих стандартных наборов
марке-
ров пошла по другому пути. Она готовит каждый из наборов на
основе только одного белка с хорошо известным значением М,
сшивая его в димеры, тримеры и далее вплоть до гексамеров
обработкой глутаровым альдегидом. Аналогичный подход в свое
время был описан и в лабораторной практике [Inouye,
1971].
Кстати, автор цитируемой работы проводил одновременно и дан-
зилирование своих маркерных белков, что позволяло ему фик-
сировать их положение при УФ-освещении без окраски геля.
При определении молекулярной
массы коллагена использо-
вание глобулярных белков в качестве маркеров возможно в том
случае, если строить график зависимости от расстояния мигра-
ции. не самой молекулярной массы белка, а длины его полипеп-
тидной цепи (логарифма числа аминокислотных остатков). Ско-
рость миграции зависит именно от размера молекулы белка —
переход к молекулярной массе предполагает некое среднее ее
значение, приходящееся на один остаток. Между тем, в состав
коллагенов входит необычно много легких аминокислот: глици-
на, аланина, пролина [Noelken et al.,
1981].
Окрашивание и элюция белков
Эти вопросы рассмотрены ниже в
специальных параграфах,
но все же имеет смысл несколько замечаний, связанных с ис-
пользованием ДДС-Na, сделать именно здесь
После электрофореза в присутствии ДДС-Na гель окрашива-
ют, как обычно, например, в 0,25%-ном растворе СВВ R-250
(см. ниже) в 9%-ной уксусной кислоте, содержащей 45% мета-
нола, в течение нескольких часов при комнатной температуре, а
затем отмывают в 7,5%-ной уксусной кислоте с 5% метанола и
добавкой ионообменника AG 501 ´ 8 для связывания красителя.
Фиксация белков идет одновременно с их окрашиванием. Од-
нако следует иметь в виду, что ДДС-Na является эффективным
детергентом и препятствует осаждению, а следовательно, и
фиксации белков. Для малых белков фиксация при окрашива-
нии может оказаться ненадежной. Их лучше фиксировать пред-
варительно, вымачивая гель в 10%-ной трихлоруксусной кисло-
те (ТХУ). ДДС-Na, находясь в комплексе с белком, еще и пре-
пятствует в некоторой мере самому процессу окрашивания.
10%-ная ТХУ частично отмывает белок от ДДС-Na. Еще лучше
это можно делать, вымачивая гель в 50%-ном растворе ТХУ (в
течение ночи). Изопропанол ускоряет вымывание ДДС-Na, по-
этому его целесообразно включить в фиксирующий белки рас-
твор.
Можно окрашивать белки в геле, вымачивая его прямо в
0,05%-ном растворе СВВ R-250 в 10%-ной ТХУ. Краситель до-
64
вольно плохо растворим в ТХУ, поэтому происходит его
распре-
деление между жидкой фазой и белками в пользу последних.
Белковые полосы проявляются очень быстро, и гель можно от
красителя не отмывать. Однако чувствительность окраски не-
сколько снижена по сравнению со стандартной процедурой. Ни-
же будут оценены возможности повышения ее чувствительности
с помощью таких флюоресцентных красителей, как данзилхло-
рид, флюоресцамин, ортофталевый альдегид и др. Здесь умест-
но отметить, что их присоединение к белкам исходного препара-
та не влияет на электрофоретическую подвижность этих белков.
Белок из неокрашенного геля можно
извлекать одним из под-
робно рассмотренных ниже способов, в частности повторной
элюцией из кусочков геля встряхиванием в течение 6 — 12 ч при
37° с четырехкратным объемом 0,01 М бикарбоната аммония с
0,1% ДДС-Na. Объединенные элюаты лиофилизируют, удаляя
бикарбонат, и растворяют в воде до 0,1 исходного объема. За-
тем для удаления ДДС-Na добавляют 9 объемов (по отношению
к воде) ацетона, лучше подкисленного, так как в нем хорошо
растворяется ДДС-Na. Белок осаждают центрифугированием и
промывают 90%-ным ацетоном. В случае необходимости более
полного освобождения белков от ДДС-Na лиофилизированный,
как указано выше, элюат из геля растворяют снова в 0,1 объе-
ма, но не воды, а 0,05 М раствора бикарбоната аммония с 6 М
мочевиной (для предотвращения неспецифической сорбции бел-
ка на смоле). Раствор пропускают через микроколонку с Do-
wex 1 ´ 2
(200 — 400 МЕШ), уравновешенную тем же буфером.
Мочевину затем удаляют диализом.
Электрофорез белков в комплексе с ДДС-Na сейчас в подав-
ляющем большинстве случаев ведут в системе, предложенной
Лэммли [Laemmli, 1970]. В этой системе обработка белка
ДДС-Na совмещена с использованием описанной ниже схемы
ступенчатого электрофореза. Такое усложнение не кажется
всегда оправданным, поскольку достаточно хорошее сужение
исходной белковой полосы можно получить просто за счет раз-
бавления буфера, в котором вносится препарат. Больший инте-
рес, по-видимому, представляет сочетание обработки белка
ДДС-Na с использованием градиента пористости геля. Этот при-
ем будет рассмотрен ниже.
Электрофорез белков в комплексе с ДДС-Na был успешно
использован для фракционирования белков хроматина без их
предварительной очистки. Хроматин диализовали в течение 12 ч
против 0,01 М Na-фосфата с 1% ДДС-Na и 1% b-меркаптоэта-
нола при комнатной температуре, а затем еще 12 ч — против
свежей порции такого же раствора при 37°. Только после этого
его прогревали в течение 3 мин при 100° и диализовали
еще 2 раза по 12 ч против того же буфера, но содержащего
вдесяте-
ро меньше ДДС-Na и (b-меркаптоэтанола.
При такой обработке
ДНК отделяется от белка и не мешает протеканию последующе-
го электрофореза белков хроматина [Elgin, 1975].
содержание .. 1 2 3 4 5 6 7 ..